Datos científicos de las llamas: sangre elíptica, nanocuerpos y fisiología
Anatomía y fisiología de Lama glama: glóbulos rojos elípticos adaptados a la hipoxia andina, anticuerpos de cadena pesada (VHH), estómago de tres cámaras y biomecánica.
TodoLlamas · Criterio editorial
Publicado · Contenido reescrito
Más allá de su papel histórico como animal de carga y productor de fibra en los Andes, la llama (Lama glama) constituye un modelo biológico extraordinario para la fisiología comparada, la inmunología molecular y la medicina veterinaria. Su linaje evolutivo combinó decenas de millones de años de adaptación a estepas áridas con una colonización posterior de la puna altoandina, un ecosistema situado con frecuencia entre los 3.700 y los 5.000 metros de altitud donde la presión parcial de oxígeno se reduce a cerca de la mitad del valor al nivel del mar, la radiación ultravioleta es extrema y los pastos son altamente fibrosos y estacionales. [1, 5] Para prosperar en estas condiciones, la llama reúne adaptaciones hematológicas, inmunológicas, digestivas y biomecánicas únicas entre los mamíferos placentarios.
Glóbulos rojos elípticos y hemoglobina de alta afinidad por el oxígeno
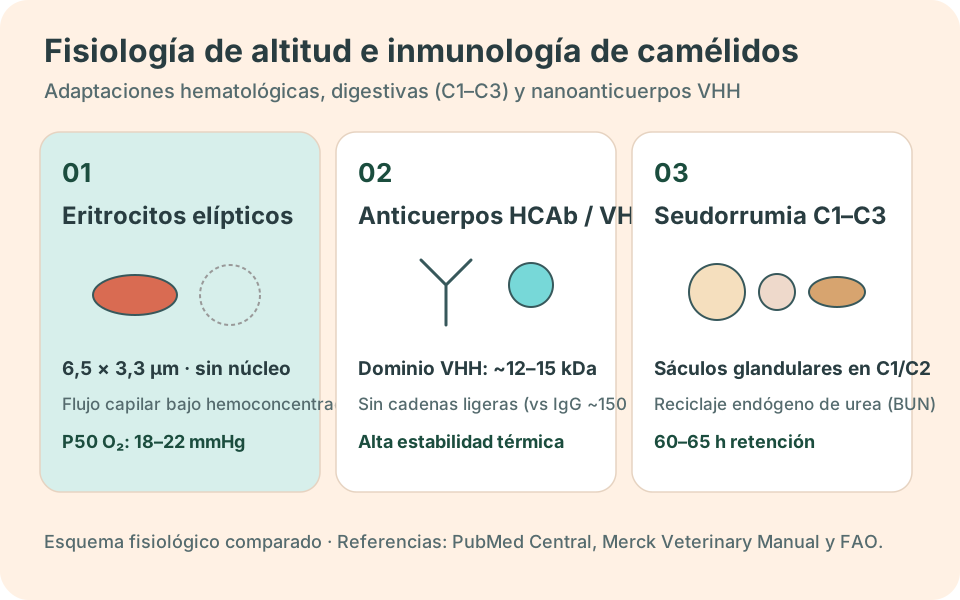
En la inmensa mayoría de los mamíferos, los eritrocitos o glóbulos rojos maduros son discos bicóncavos circulares. Los camélidos constituyen la gran excepción dentro de la clase Mammalia: sus eritrocitos son pequeños, planos, anucleados y de forma marcadamente elíptica u ovalada (aproximadamente 6,5 × 3,3 micrómetros). Esta geometría elíptica, sostenida por un citoesqueleto de espectrina y bandas marginales altamente especializado, ofrece dos ventajas fisiológicas cruciales. En primer lugar, permite que las células sanguíneas atraviesen los capilares más estrechos sin deformarse ni obstruir la microcirculación cuando el animal sufre deshidratación y aumenta la viscosidad plasmática. En segundo lugar, confiere a los glóbulos rojos una resistencia osmótica excepcional, evitando su lisis o rotura cuando el animal bebe grandes volúmenes de agua en pocos minutos tras una jornada de marcha árida.
A esta morfología celular se suma una adaptación bioquímica en la molécula de hemoglobina. Mientras que los mamíferos de tierras bajas responden a la hipoxia de altitud disparando la producción de glóbulos rojos (policitemia secundaria), lo que espesa la sangre y sobrecarga el ventrículo derecho del corazón provocando mal de montaña crónico, la llama mantiene un hematocrito moderado (alrededor del 27 al 35 %). Su secreto reside en una hemoglobina con altísima afinidad por el oxígeno y una curva de disociación desplazada hacia la izquierda (baja presión parcial de saturación P50), lo que le permite captar oxígeno de forma eficiente en el aire enrarecido de los pulmones a más de 4.000 metros sin incrementar la resistencia vascular pulmonar. [1, 4]
Anticuerpos de cadena pesada y nanocuerpos (VHH) en biotecnología
Uno de los hallazgos más revolucionarios de la inmunología contemporánea tuvo lugar al analizar el suero sanguíneo de los camélidos. En los seres humanos y en la mayoría de los vertebrados, todos los anticuerpos convencionales de tipo inmunoglobulina G (IgG) son proteínas heterotetraméricas compuestas por dos cadenas pesadas y dos cadenas ligeras (~150 kilodaltons). Sin embargo, el sistema inmunitario de las llamas, alpacas y camellos produce, además de IgG convencionales, una clase funcional de anticuerpos formados exclusivamente por dímeros de cadenas pesadas que carecen por completo de cadenas ligeras y del primer dominio constante CH1.
La región variable de unión al antígeno de estos anticuerpos de cadena pesada se denomina dominio VHH o nanocuerpo (nanobody). Con una masa molecular de apenas 12 a 15 kilodaltons —una décima parte del tamaño de un anticuerpo entero—, el fragmento VHH de la llama es el dominio de reconocimiento antigénico natural más pequeño que se conoce. Posee bucles hipervariables (especialmente el bucle CDR3) más largos y flexibles que los anticuerpos humanos, lo que le permite introducirse en hendiduras profundas, sitios activos de enzimas y epítopos crípticos de virus que resultan inaccesibles para los anticuerpos convencionales. Además, los nanocuerpos de llama resisten temperaturas elevadas, variaciones extremas de pH y desnaturalizantes químicos, y pueden expresarse fácilmente en bacterias o levaduras para desarrollar terapias antivirales, agentes diagnósticos de imagen tumoral y antídotos contra toxinas.
Fisiología digestiva pseudorrumiante y reciclaje de urea
Aunque las llamas mastican el bolo alimenticio regurgitado y fermentan celulosa vegetal, taxonómicamente no pertenecen al suborden Ruminantia (como vacas, ovejas y ciervos), sino al suborden Tylopoda. [1, 4] Esta evolución convergente se refleja en la anatomía de su estómago, dividido en tres compartimentos denominados C1, C2 y C3, en lugar de las cuatro cámaras clásicas (rumen, retículo, omaso y abomaso) de los rumiantes verdaderos. [3]
El primer compartimento (C1) representa más del 80 % del volumen gástrico y funciona como una cuba de fermentación anaerobia acoplada al segundo compartimento (C2). A diferencia del rumen bovino, tapizado de papilas queratinizadas sin glándulas, tanto C1 como C2 presentan en su pared ventral bolsas glandulares especializadas llamadas sáculos (saccobionts), cuya secreción rica en bicarbonato tampona los ácidos grasos volátiles producidos durante la fermentación. El tercer compartimento (C3) es un órgano tubular alargado cuyo quinto distal contiene las glándulas gástricas secretoras de ácido clorhídrico y pepsina. [2, 3]
Gracias a una motilidad gástrica muy potente y a un tiempo de retención prolongado de las partículas fibrosas (hasta 50–60 horas, frente a unas 30–40 horas en ovinos), la llama extrae energía con mayor eficiencia de los pastos lignificados y pobres en proteína de la puna. A ello contribuye un extraordinario mecanismo de reciclaje renal y hepático de nitrógeno: cuando la dieta es escasa en proteínas, la llama reduce drásticamente la excreción urinaria de urea y devuelve la mayor parte de la urea plasmática hacia el compartimento C1 a través de la saliva y de la pared gástrica, donde las bacterias simbióticas la utilizan para sintetizar proteína microbiana de alto valor biológico. Consulta nuestra guía sobre qué comen las llamas para ver cómo aplicar esta fisiología al manejo del forraje.
Dentición especializada, labio hendido y «dientes de pelea»
La anatomía oral de la llama está diseñada para el pastoreo selectivo sin degradar la cubierta vegetal. Su labio superior está dividido por un surco medio profundo (philtrum) en dos mitades prensiles móviles de forma independiente, lo que le permite escoger hojas tiernas entre tallos espinosos o pedregosos. [1, 2] En la mandíbula inferior posee seis incisivos espatulados procumbentes que cortan el pasto presionando contra una almohadilla dental fibrosa y dura situada en el maxilar superior, el cual carece de incisivos centrales y medios.
Sin embargo, los camélidos conservan en el adulto un rasgo arcaico ausente en bovinos y ovinos: los llamados dientes de combate o dientes de pelea (fighting teeth). [2] Se trata de seis piezas caniniformes muy afiladas y curvadas hacia atrás —un tercer incisivo superior modificado (I3), un canino superior y un canino inferior a cada lado del diastema— que alcanzan gran desarrollo en los machos enteros hacia los dos o tres años de edad. Los machos los emplean en las disputas territoriales y jerárquicas para morder las patas, el cuello y el escroto de sus rivales, como explicamos al abordar la historia evolutiva en la evolución de los camélidos.
Almohadillas plantares, paso de ambladura y ventana térmica
| Sistema biológico | Rasgo anatómico o molecular | Función adaptativa principal |
|---|---|---|
| Hematológico y respiratorio | Eritrocitos elípticos planos anucleados y hemoglobina de alta afinidad por el O₂. | Transporte eficiente de oxígeno a 3.500–5.000 m sin hiperviscosidad sanguínea y resistencia a cambios osmóticos. |
| Inmunológico | Anticuerpos de cadena pesada sin cadenas ligeras (dominios variables VHH / nanocuerpos). | Unión a epítopos ocultos o crípticos con alta estabilidad térmica y estructural. |
| Digestivo (Tylopoda) | Estómago de tres cámaras (C1, C2 y C3) con sáculos glandulares y reciclaje de urea. | Digestión óptima de forrajes fibrosos pobres en nitrógeno y neutralización ácida continua. |
| Locomotor y podal | Dos dedos con almohadilla plantar coriácea (tylium), uñas delanteras y paso de ambladura. | Tracción segura en terrenos rocosos, menor compactación del suelo y ahorro energético en marcha. |
| Termorregulador | Doble capa de vellón dorsal combinada con «ventana térmica» ventral de pelo ralo. | Aislamiento frente a heladas nocturnas y disipación controlada del calor mediante postura corporal. |
El nombre del suborden Tylopoda significa literalmente «pies con almohadillas». En lugar de apoyar sobre el extremo de la tercera falange envuelta en un casco rígido (locomoción ungulígrada), la llama apoya las falanges media y distal de sus dos dedos (III y IV) sobre almohadillas digitales elásticas de tejido adiposo y conectivo recubiertas por una suela coriácea, con dos uñas curvas en la punta. [1, 5] Al caminar y trotar utiliza la ambladura (pacing gait), avanzando simultáneamente la pata delantera y la trasera del mismo lado lateral, lo que alarga la zancada y estabiliza el centro de gravedad bajo carga.
Por último, la llama regula su temperatura corporal frente a oscilaciones térmicas diarias de más de 25 °C combinando su denso vellón dorsal con una «ventana térmica» situada en el vientre, las axilas y la cara interna de los muslos, donde la piel tiene escaso pelo y abundante irrigación sanguínea superficial. [2] En las noches heladas del altiplano, el animal se pliega en decúbito esternal (posición de kush) ocultando las patas y sellando la ventana térmica contra el suelo; bajo el calor del mediodía o en climas cálidos, eleva el cuerpo o extiende las extremidades a la sombra para favorecer la convección y la radiación del calor. Puedes comparar cómo varían el vellón y el tamaño en las cuatro especies andinas en nuestra guía de diferencias entre llamas, alpacas, vicuñas y guanacos.
Preguntas frecuentes sobre la biología de las llamas
- ¿Las llamas tienen cuatro estómagos como las vacas? No; las llamas son pseudorrumiantes y poseen un único estómago dividido en tres compartimentos interconectados (C1, C2 y C3) dotados de sáculos glandulares. [2, 3]
- ¿Los glóbulos rojos de las llamas tienen núcleo? Los glóbulos rojos maduros circulantes de la llama son anucleados (no tienen núcleo), igual que en el resto de los mamíferos, pero se distinguen por su forma elíptica y plana en lugar de circular y bicóncava.
- ¿Para qué sirven en medicina humana los nanocuerpos de llama? Los fragmentos VHH derivados de anticuerpos de cadena pesada de camélidos se emplean en investigación biomédica y farmacología para bloquear virus respiratorios, neutralizar toxinas, estabilizar proteínas para cristalografía de rayos X y dirigir fármacos contra células tumorales.
Fuentes y referencias
- Universidad de Michigan, Animal Diversity Web: Lama glama
- Merck Veterinary Manual: manejo, alimentación y alojamiento de llamas y alpacas
- Merck Veterinary Manual: anatomía del estómago de la llama
- Fan y colaboradores (2020): análisis genómico de la domesticación de llama y alpaca, Genome Biology
- FAO: Manual de prácticas de manejo de alpacas y llamas, prólogo y distribución